

海水中的金属腐蚀在地表水和浅水中得到了广泛的研究。然而,基础设施越来越多地安装在深海环境中,极端的温度、盐度和高静水压力增加了与监测腐蚀相关的成本和后勤挑战。此外,目前对微生物引起的腐蚀的作用只有初步的了解,在深海中很少有研究。我们在这里报告了一项对腐蚀系泊链环表面生长的生物膜的综合研究,该链环已在约2公里深处部署了10年,并基于通量平衡分析开发了一个微生物诱导腐蚀模型。使用光学发射光谱法分析系泊链的化学成分,能量色散X射线光谱法结合扫描电子显微镜鉴定腐蚀产物和超微结构特征。微生物组的分类结构是通过霰弹枪宏基因组学确定的,并通过16S扩增子分析和dsrB基因的定量PCR得到证实。通过生成分箱的基因组组装并对优势类群的代谢进行通量平衡分析,进一步分析了功能能力。链节表面显示出强烈的局部腐蚀,具有微生物诱导腐蚀的典型结构特征。链上的微生物组与周围沉积物的微生物组有很大不同,这表明选择了以硫循环细菌为主的特定金属腐蚀生物膜。重建了微生物组的核心代谢,以生成一个结合生物和非生物腐蚀的机制模型。基于这一代谢模型,我们提出硫酸盐还原和硫歧化可能在深海腐蚀中发挥关键作用。观察到的腐蚀速率高于在这些环境条件下非生物腐蚀机制的预期。高腐蚀速率和腐蚀形式(深坑)表明,链节的腐蚀是由非生物和生物过程共同驱动的。我们认为,腐蚀是由深海硫循环微生物驱动的,这些微生物可能通过加速金属铁和元素硫之间的反应来获得能量。这项实地研究的结果为深海腐蚀过程的生态生理学提供了重要的新见解。
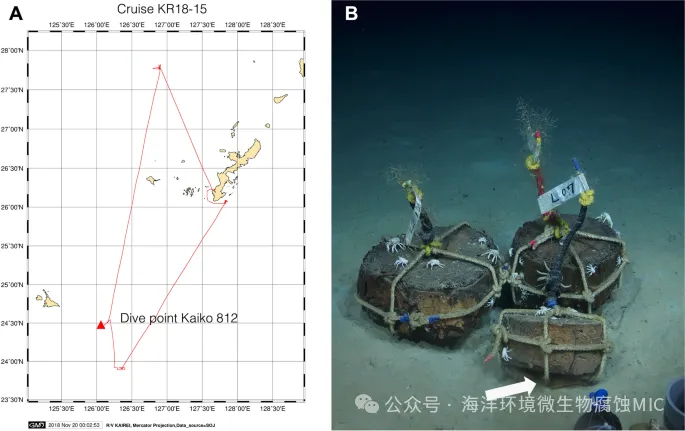
图一:研究现场的地图,显示了KR18-15巡航路线和KAIKO 812潜水的潜水点,以收集部署10年后的系泊链。B检索前系泊链位置的图像(白色箭头)。
深海勘探正受到越来越多的工业关注,因为包括矿产、石油和天然气在内的许多易接近地区的资源已被消耗。深海水下技术的进步为从深海环境中回收自然资源开辟了新的可能性。即使是太阳能、风能和潮汐能等可再生能源应用,现在也希望扩展到深海地区,从而对深水系泊和其他基础设施的需求越来越大。深海勘探的扩张需要在深海中使用金属结构,最常见的是钢铁材料。然而,了解材料在这些条件下的行为,这是环境安全和经济可行操作的重要组成部分,仍然有限。
腐蚀过程对海底结构的整体寿命起着不利作用,在表层和浅海的低静水压力下已经得到了很好的研究。然而,深海环境与浅海地区有很大不同,其特征是温度低、有机营养物质的输入有限且零星,以及静水压力高。越来越多的证据表明,钢在高静水压力下的腐蚀机制与浅水中的腐蚀机制不同。静水压力的增加似乎加速了亚稳态点蚀的开始,降低了点蚀生长的可能性,这增加了钢材料对均匀腐蚀的敏感性。深海应用中的金属结构与自然环境接触,因此容易受到微生物引起的腐蚀(MIC)和生物污染。深海沉积物中含有微生物(细菌、古菌、真菌和原生生物),在腐蚀不利的环境中,这些微生物可能会加速腐蚀。特别是,微生物可能对钢的腐蚀有很大贡献,因为它们能够加速几种类型的腐蚀,包括广义和局部腐蚀(例如点蚀、缝隙腐蚀和应力腐蚀开裂)。此外,众所周知,微生物的代谢活性、多样性、生理学和生态学都受到静水压力的强烈影响。因此,在MIC的背景下研究压力适应微生物至关重要。
通常,未涂覆的低碳钢在海水中会迅速腐蚀,形成腐蚀产物层,作为扩散屏障,保护钢免受进一步腐蚀。然而,众所周知,钢表面形成的微生物群落会破坏这种腐蚀产物层的稳定性,从而使腐蚀继续进行。阴极腐蚀反应中非生物产生的氢气可能对深海环境中天然存在的微生物起到化学引诱剂的作用。其中一类微生物是硫酸盐还原菌(SRB)。在海水环境中,众所周知,SRB会加速低碳钢的整体腐蚀过程,并导致钢的局部腐蚀损伤和应力腐蚀开裂。
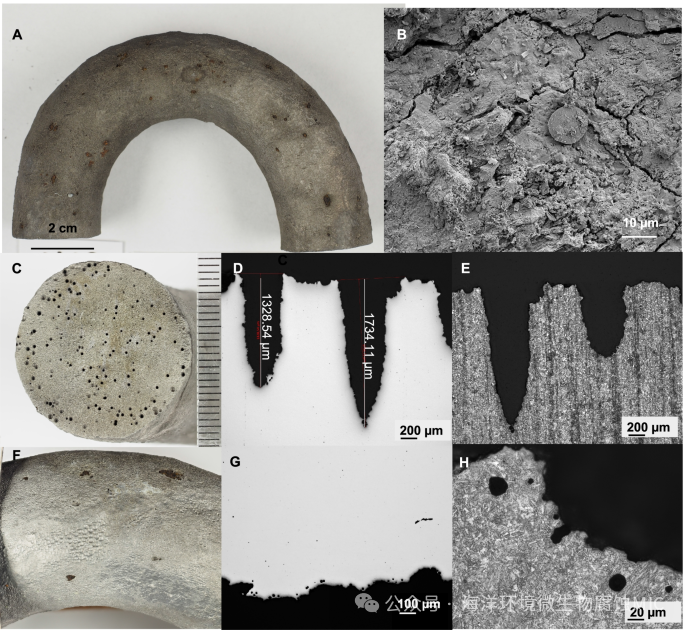
图二:系泊链节在深海条件下暴露10年后出现严重的局部腐蚀。去除腐蚀产物后链节的概述。B腐蚀产物的SEM图像。C在链节末端观察到强烈的点蚀。D-E横截面分析系泊链节末端基材的点蚀渗透,抛光和蚀刻。F链节侧面出现广泛的局部腐蚀。对基材、抛光和蚀刻表面的点蚀渗透进行G-H横截面分析。
取回后,系泊链节完全被厚厚的黑色表面沉积物覆盖,有明显的硫化氢气味。EDS结果表明腐蚀产物层中硫含量高(5-25w%)。EDS观察到的其他主要成分是铁(Fe 8‑62 w%)、氧(O 30‑52 w%)和碳(C 5‑19 w%)。除了这些主要成分外,还检测到Si、Na、Mg、Al、Cl、K、Ca和Mn。腐蚀产物结晶部分的XRD分析表明存在磁铁矿(Fe3O4)、FeCO3和硫化铁(II)(FeS),大多数腐蚀产物是无定形的。去除沉积层显示出强烈的局部腐蚀(图2A,C)。根据横截面测量,系泊链表面的一般腐蚀估计为~100μm/年。局部腐蚀速率高于一般腐蚀速率,系泊链节末端的一些坑深达2mm,估计腐蚀速率高达200μm/年。系泊链节的微观结构是α-铁素体钢的典型特征。垂直横截面上可见带状物。沿带状微观结构,系泊链节末端的点蚀深度(2 mm)大于链节侧面的点蚀厚度(200μm)。链节侧面的点蚀较宽(宽度可达4mm),但偶尔会到达钢成型隧道的地下,而链节末端的点蚀又窄又深。
随机表面切片的SEM成像显示,微生物细胞在系泊链外表面以及颗石藻板和碎片上广泛定植。使用qPCR对系泊链内外沉积层的细菌和古细菌群落进行了定量。对于所有三条系泊链,内层的细菌群落数量多于外层,分别为109和105‑107个细菌16SrRNA基因拷贝/g。根据dsrB基因拷贝数,硫酸盐还原菌在内层(109个基因拷贝/g)的数量也比外层(105-106个基因拷贝g/g)多3个对数。
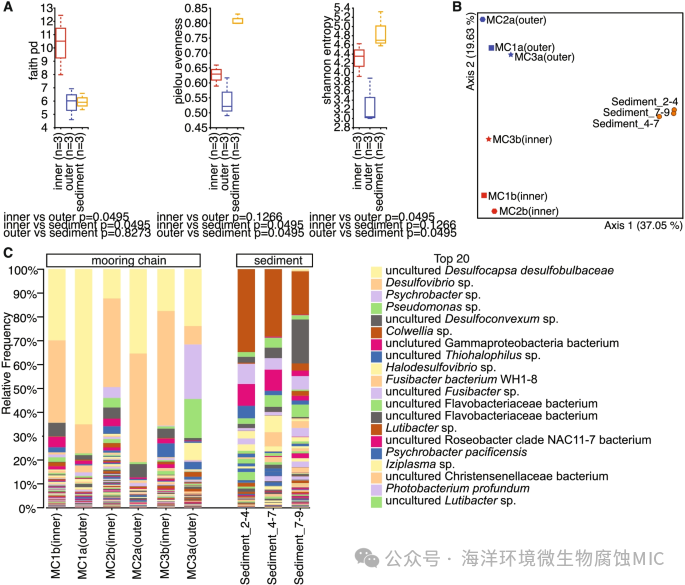
图三:基于Shannon多样性指数、Faith系统发育多样性和基于16S rRNA扩增子测序的均匀度计算的阿尔法多样性指标。红色代表系泊链内层,蓝色代表系泊链外层,橙色代表沉积物。B使用未加权UniFrac距离度量用PCoA可视化的微生物群落差异。轴1和轴2分别解释了37.05%和19.63%的方差。红色代表系泊链内层,蓝色代表系泊链外层,橙色代表沉积物。C在系泊链内外层或沉积物(深度2-4cm、4-7cm和7-9cm)中检测到的微生物物种的相对丰度。
此处检测到的系泊链钢的腐蚀速率高于仅基于化学条件的预期。据估计,深海中钢铁的腐蚀与海水中溶解氧的量成正比。根据Reinhart,系泊链部署位置附近海水中的溶解氧为2mg/L,这将导致平均腐蚀速率为75μm/年,远低于本研究中估计的~100μm/每年。可以合理地假设,系泊链表面的实际氧气浓度甚至更低,因为它部分嵌入了沉积物中,这将导致仅基于非生物反应的较低腐蚀速率。此外,深海条件下非生物驱动的腐蚀预计是均匀的,而在本研究中,腐蚀是高度局部化的。在某些情况下,钢的微观结构(如带状)与局部腐蚀的增加趋势有关,即端部晶粒腐蚀,这解释了与链节侧面相比,链节末端的渗透更深。
通常,在沉船或沉没的潜艇上观察到的被称为锈迹的结构中,大型氧化铁/氢氧化物占主导地位,通常被认为是铁氧化细菌和SRB的产物。与沉船有关的深海腐蚀通常发生在开阔水体中海床上方几米到几十米处。相比之下,系泊链环嵌入沉积物中,环境可能微氧/缺氧,导致MIC过程非常不同。因此,本研究中观察到的腐蚀过程与大多数报告的深海MIC案例非常不同,这可能与本研究中不同的群落组成和环境有关。
根据dsrB基因丰度以及扩增子和宏基因组群落分析,系泊链生物膜的微生物组以SRB为主。周围沉积物中的微生物群落与系泊链表面富集的群落差异很大。对于硫或硫代硫酸盐歧化脱硫衣壳和硫酸盐还原脱硫弧菌或伪脱硫弧菌物种来说尤其如此,这些物种在系泊链钢表面富集。它们可能受益于与释放H2和Fe2+的非生物腐蚀过程的相互作用。系泊链腐蚀产物中检测到的脱硫衣壳类似于不成比例的无机硫化合物S0或硫代硫酸盐,并且会生长出自我营养固定的CO2。如果硫化物积聚,元素硫的不成比例在能量上是无效的,除非存在外部氧化剂,在这种情况下是Fe2+,作为硫化物清除剂,这使得该过程在能量上有利,通常会导致FeS或FeS2的积聚。为了支持这一机制,FeS被确定为形成系泊链表面沉积层的主要成分之一。缺乏浅水SRB的特征基因,如参与修复紫外线辐射诱导的DNA损伤的脱氧核糖二嘧啶光解酶基因,这表明参与腐蚀过程的物种确实是真正的深海物种。有趣的是,在本研究的MAG中没有观察到以前与深海微生物生命相关的其他基因组特征,如更大的基因间区域和更高比例的转座因子。这是否与特定栖息地的基因增殖差异、种群瓶颈或系泊链生物膜内发生的独特生态相互作用有关,还有待发现。
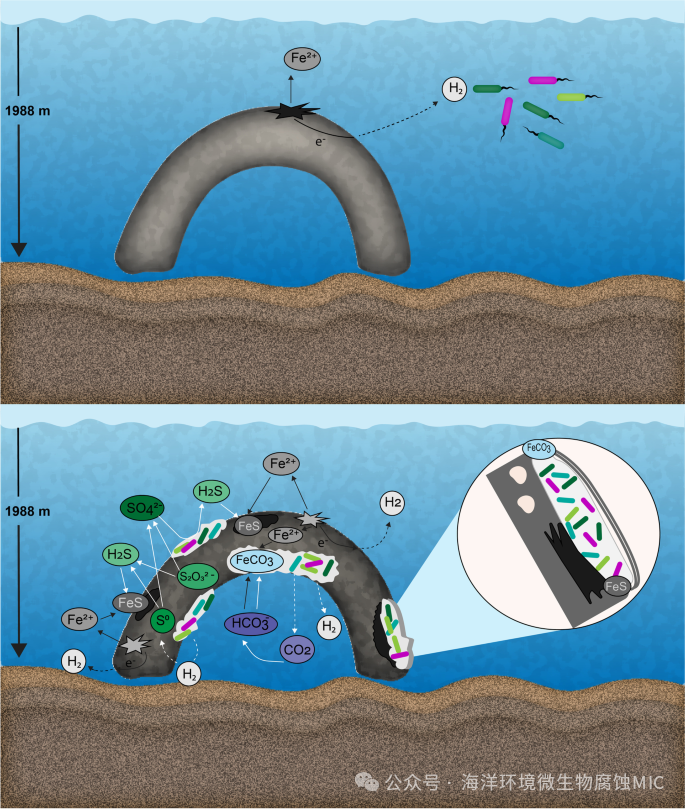
图四:深海条件下诱导系泊链上钢腐蚀的非生物(黑色箭头)和生物(白色箭头)过程的示意图模型。在上图中,H2的非生物产生可能为初始生物膜定殖提供化学线索。
除了硫循环微生物外,在系泊链表面还检测到其他较低丰度的低温深海高静水压力适应微生物。这些包括Fe2+或H2氧化微生物,如属于Mariprofundus属的细菌,也可能受益于非生物腐蚀过程。有趣的是,这些分类群通常与这里没有检测到的羟基氧化铁的产生有关。这可能表明,在这些条件下,这些微生物没有主动氧化Fe2+,或者它们的代谢终产物很容易被非生物还原为FeS。
与该系统中铁的循环完全是非生物的假设一致,MAG分析中只发现了铁转运蛋白和铁载体。这表明铁被用于同化,而不是用于能量产生。在群落代谢模型中观察到血红素的正摄取也支持了铁的同化摄取。硫酸盐可以通过SRB(例如,这里检测到的脱硫弧菌和伪脱硫弧菌)利用阴极或生物产生的H2作为电子供体。硫循环微生物可以通过加速金属铁和元素硫之间的反应来获得能量,在没有这些微生物的情况下,反应会进行得更慢。FeS、S0和FeCO3是系泊链表面沉积物的重要组成部分。这些沉积物的导电特性将允许电子转移,进一步增加腐蚀速率。此外,基因组证据表明,最近在深海中描述的新型硫代硫酸盐氧化途径具有潜力。基于通量的MAG分析强调了系泊链微生物群落中H+和CO2的分泌,支持反应3-6。因此,基于这些反应和存在的生物,我们认为,意想不到的极高腐蚀率是一种独特的、适应深海的微生物群落的共同结果,这种微生物群落以不同于浅海中报告的腐蚀案例的方式驱动腐蚀,突出了对这些极端环境中MIC进行更详细了解的必要性。
参考文献
Rajala, P., Cheng, DQ., Rice, S.A. et al. Sulfate-dependant microbially induced corrosion of mild steel in the deep sea: a 10-year microbiome study. Microbiome 10, 4 (2022). https://doi.org/10.1186/s40168-021-01196-6
免责声明:本网站所转载的文字、图片与视频资料版权归原创作者所有,如果涉及侵权,请第一时间联系本网删除。
官方微信
《腐蚀与防护网电子期刊》征订启事
- 投稿联系:编辑部
- 电话:010-62316606
- 邮箱:fsfhzy666@163.com
- 腐蚀与防护网官方QQ群:140808415

“海洋金属”——钛合金在舰船的

腐蚀与“海上丝绸之路”