

钛合金依赖致密的TiO₂富集钝化膜获得优异耐蚀性。正因如此,在厌氧海洋环境中,微生物如何跨越这一电化学屏障并从合金获取电子,一直是钛合金微生物腐蚀机理中的关键问题。对于活性金属,金属溶解与表面析氢可以直接耦合,而在钝化钛合金上,完整氧化膜会显著抑制金属溶解和质子还原,传统的氢中介电子传递路径并不能直接套用。
本文介绍一篇发表于Corrosion Science的研究,作者以Desulfovibrio bizertensis SY-1与Ti-6Al-4V为对象,结合钝化膜截面表征、电化学测试、碳源匮乏试验、转录组分析、胞外氢化酶活性测定及无细胞上清对照,提出了钝化膜先失稳、胞外氢化酶随后催化H₂生成的顺序机制。其核心不在于简单证明SRB能够腐蚀钛合金,而在于解释钝化膜破坏后,合金电子如何转化为微生物可利用的还原当量。
▌ 论文信息
|
原文题目:Extracellular hydrogenases mediate electron transfer in microbiologically influenced corrosion of Ti-6Al-4V by Desulfovibrio bizertensis SY-1 作 者:Jiahang Li, Qin Cheng, Enze Zhou, Yongqiang Fan, Li Ma, Fuhui Wang, Dake Xu 期 刊:Corrosion Science 272 (2026) 114196 原文链接:https://doi.org/10.1016/j.corsci.2026.114196 |
▌ 研究背景
硫酸盐还原菌(SRB)引起的厌氧微生物腐蚀通常包含两类作用:一类由H₂S、HS⁻等代谢产物驱动,另一类涉及微生物与金属之间的胞外电子传递。对于铁等活性金属,表面质子还原生成的H₂可被Desulfovibrio属细菌利用,氢化酶因此被视为连接金属氧化与胞内硫酸盐还原的重要环节。钛合金的情况更为复杂。完整的TiO₂富集钝化膜将金属基体与溶液和生物膜隔离,同时抑制析氢反应。因而,氢化酶活性本身并不足以解释钛合金上的电子获取,必须首先回答钝化膜是否、以及如何转变为能够发生界面质子还原的活性表面。已有研究提示SRB产生的硫化物和生物膜微环境可削弱钛合金钝化膜,但钝化膜缺陷演化、H₂生成、胞外氢化酶和微生物代谢之间的耦合关系仍缺少连续证据。
本研究由此提出一个可检验的机理假设,厌氧环境首先促使钝化膜形成氧空位相关缺陷,生物硫化物随后进入并进一步破坏缺陷富集的氧化层;当表面出现电化学活性位点后,胞外氢化酶催化质子还原生成H₂,H₂再作为可扩散载体进入细胞并支持硫酸盐还原。
▌ 研究思路
研究采用Ti-6Al-4V圆片与D. bizertensis SY-1构建厌氧人工海水体系。常规培养后设置100%、50%和10%碳源条件,乳酸钠浓度分别为60、30和6 mM,以考察有机电子供体不足时微生物是否增强对合金电子的利用。试样先在SRB体系中预培养7天,使生物膜建立并诱导钝化膜变化,再转入不同碳源水平的新鲜介质继续培养7天。钝化膜及界面则采用FIB-TEM/EDS、XPS、EPR和Mott-Schottky分析。腐蚀行为通过开路电位、线性极化、电化学阻抗谱和动电位极化评价,并结合三维形貌统计最大蚀坑深度与蚀坑密度。附着生物膜则通过SEM、CLSM和细胞计数表征。
为识别电子获取路径,作者进一步比较了10%与100%碳源条件下附着生物膜的转录组响应,并测定无细胞滤液中的氢化酶活性。随后以新鲜人工海水、含胞外酶的无细胞培养上清(SCM)和热失活上清(HISCM)构建对照,检测受损钝化膜表面的H₂生成、硫酸盐消耗、细胞活性及Ti、Al、V离子释放。同时利用外膜c型细胞色素定位预测和导电纳米磁铁矿注入试验,评估直接电子传递路径的可能性。
▌ 主要结果
钝化膜缺陷化是后续电子获取发生的前提。
FIB-TEM结果显示,无菌介质中Ti-6Al-4V表面的钝化膜厚度约为7.2 ± 0.8 nm,SRB暴露后降至5.6 ± 0.6 nm。SRB组氧化层上方出现富硫沉积层,硫元素信号同时进入O富集的钝化膜区域,表明生物硫化物已参与界面膜层演化。该结果说明,SRB作用并非仅停留在钝化膜外侧,而是伴随膜层变薄和硫物种向缺陷区域渗入。
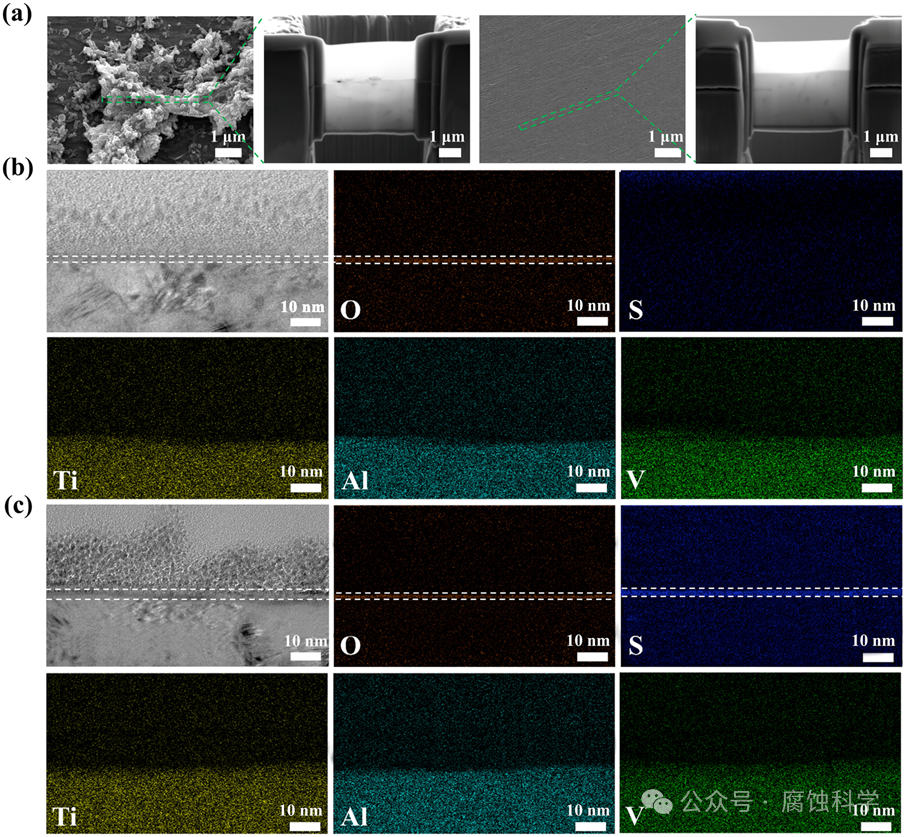
图1 Ti-6Al-4V在无菌介质和SRB培养液中暴露后的钝化膜截面及元素分布。
EPR在厌氧浸泡后检测到g≈2.002的氧空位相关信号。XPS中缺陷氧比例由无菌条件下的21.1%升至SRB条件下的45.7%,Ti³⁺比例达到31.8%;Mott-Schottky分析得到的施主密度由1.2 × 10¹⁸ cm⁻³增至4.4 × 10¹⁸ cm⁻³。SRB暴露膜层中,S²⁻占含硫物种的60.8%。这些结果共同支持厌氧诱导缺陷形成—SRB进一步提高缺陷密度—生物硫化物进入并削弱膜层的连续过程。
界面电化学响应与膜层变化相一致。14天后,SRB组腐蚀电流密度为14.3 ± 1.2 nA·cm⁻²,明显高于无菌组的2.5 ± 0.4 nA·cm⁻²;Rct + Rf则持续低于无菌介质,说明钝化膜与界面反应阻力同步下降。需要指出的是,截面元素分布与XPS支持Ti–S相互作用和硫化物侵入,但对具体钛硫化物晶相的确定仍需更直接的结构证据。
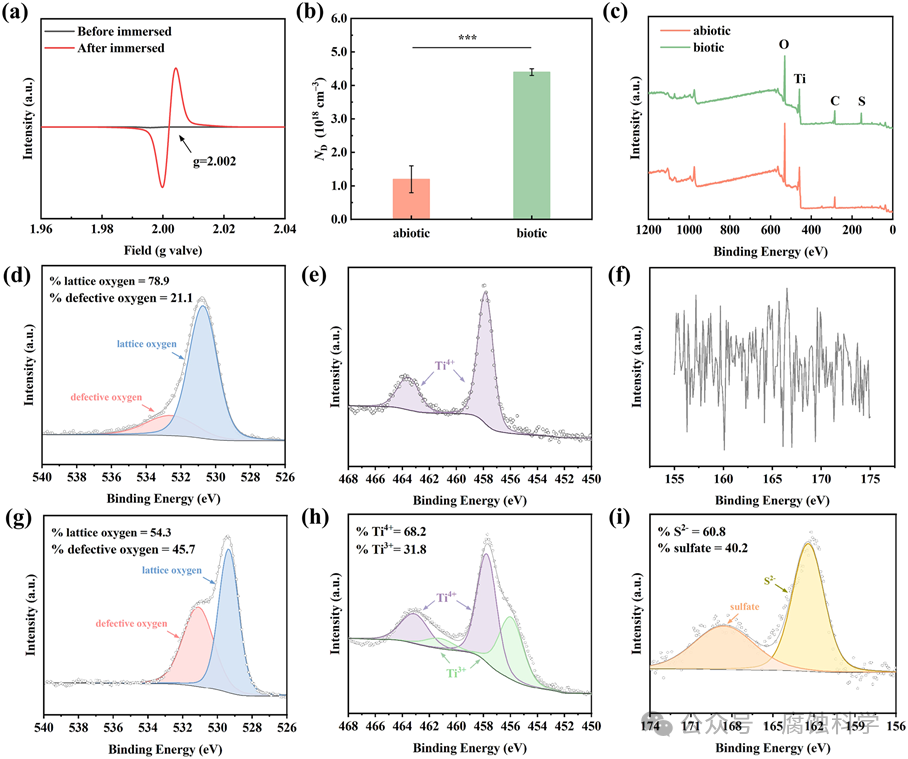
图2 Ti-6Al-4V钝化膜中氧空位相关缺陷、施主密度及化学组成的演化。
碳源匮乏降低了生物膜量,却显著强化了局部腐蚀。
随着碳源由100%降至10%,生物膜厚度由39.2 ± 4.6 μm降至25.6 ± 4.8 μm,活细胞比例由93.1%降至58.4%。表面附着细胞和总体代谢活性均下降,说明低碳条件并未形成更厚或更活跃的生物膜。若只以生物膜量判断MIC风险,容易得出腐蚀减弱的结论。
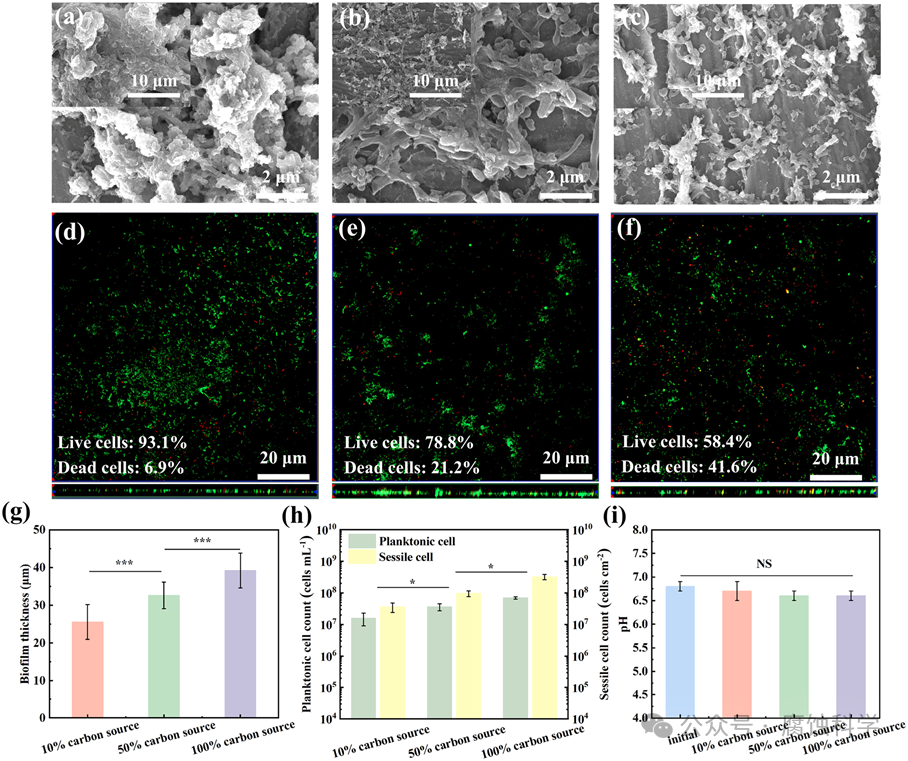
图3 不同碳源水平下的生物膜形貌、活死细胞分布、生物膜厚度及细胞数量。
然而,腐蚀数据呈现了相反趋势。100%、50%和10%碳源条件下,最大蚀坑深度分别为4.9、7.2和9.6 μm;蚀坑密度由560 ± 105 pits·cm⁻²增至960 ± 100 pits·cm⁻²。相应腐蚀电流密度由14.9 ± 2.6 nA·cm⁻²升至36.7 ± 2.4 nA·cm⁻²,10%碳源条件下的最大蚀坑深度和腐蚀电流密度分别约为100%碳源条件的1.9倍和2.5倍。结果表明,附着生物量下降并不意味着金属电子获取能力下降;处于电子受限状态的剩余细胞可能转而增强替代性电子获取。
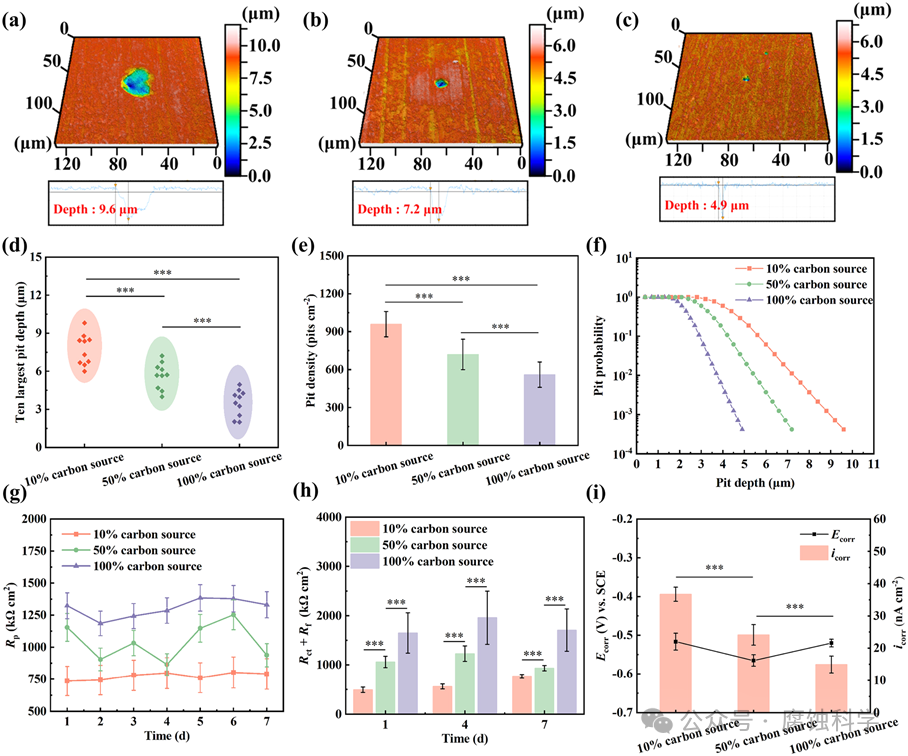
图4 不同碳源水平下Ti-6Al-4V的蚀坑形貌、蚀坑统计和电化学响应。
低碳条件激活了氢化酶相关代谢和能量保守途径。
10%与100%碳源条件之间共检测到867个差异表达基因,其中421个上调、446个下调。氢化酶成熟与催化相关基因hypA、hypB、hypD、hypE,以及[FeFe]-氢化酶H簇装配相关的hydF、hydE和hydG显著上调;qrcA、tmcA等膜相关电子传递基因也发生变化。转录组结果说明,在有机电子供体不足时,D. bizertensis SY-1重新配置了氢代谢、电子传递与能量保守网络。转录组本身只能说明代谢潜力发生变化,不能单独区分直接金属电子摄取与H₂中介路径。作者因此将基因表达与胞外酶活性、H₂生成和热失活对照相结合,避免仅凭转录水平推断界面电子传递机制。
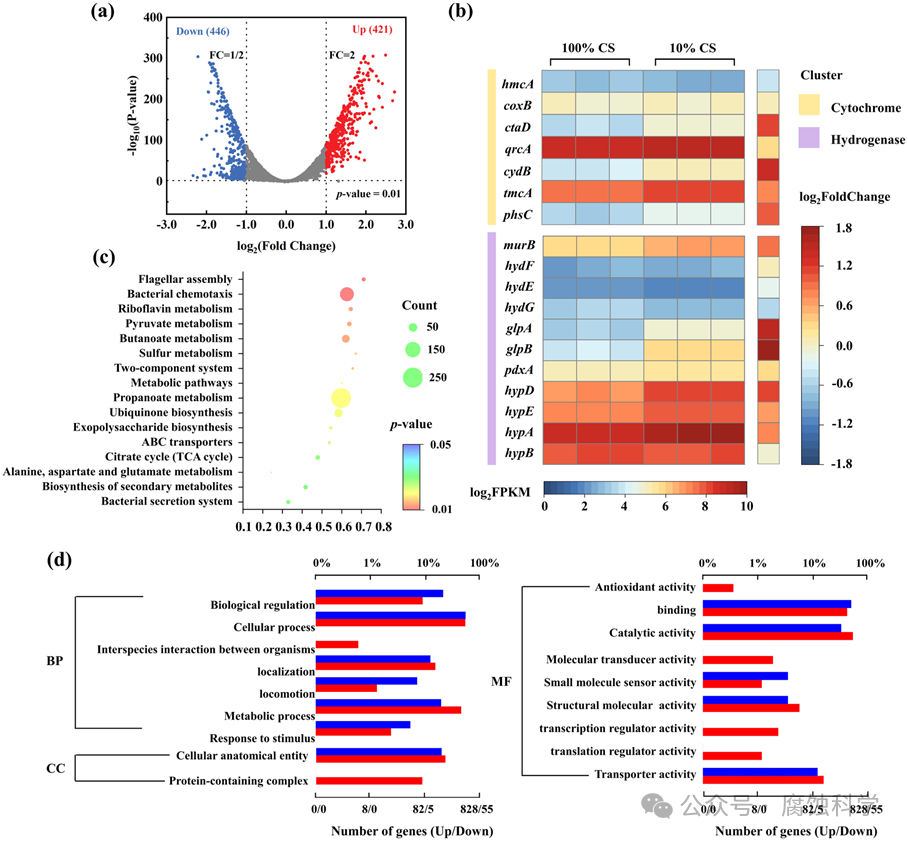
图5 D. bizertensis SY-1在碳源匮乏条件下的差异表达基因、氢化酶及细胞色素相关基因表达。
无细胞上清与热失活对照将主要路径指向胞外氢化酶介导的H₂传递。
10%碳源条件下无细胞滤液的氢化酶活性约比100%碳源条件高一个数量级。预先经历SRB暴露、钝化膜已受损的Ti-6Al-4V置于SCM后,12 h时顶空气相中检测到约1.1 μmol H₂,并随时间继续增加;新鲜EASW和热失活HISCM中的H₂累积接近背景水平。这说明受损膜面具备质子还原位点,而活性胞外氢化酶能够显著促进界面H₂生成。在Ti-6Al-4V作为唯一外部电子供体的对照体系中,含活性胞外酶的SCM组出现明显硫酸盐消耗、细胞生长和金属离子释放;氢化酶热失活后,这些过程基本被抑制,HISCM中的金属离子释放不足SCM组的5%。与此同时,基因组定位预测显示该菌株可能缺少典型外膜c型细胞色素,导电纳米磁铁矿的加入也未产生可辨识的电化学促进效应。在本研究条件下,证据更支持H₂作为主要中介载体,而非以导电颗粒或外膜细胞色素为核心的直接电子摄取。
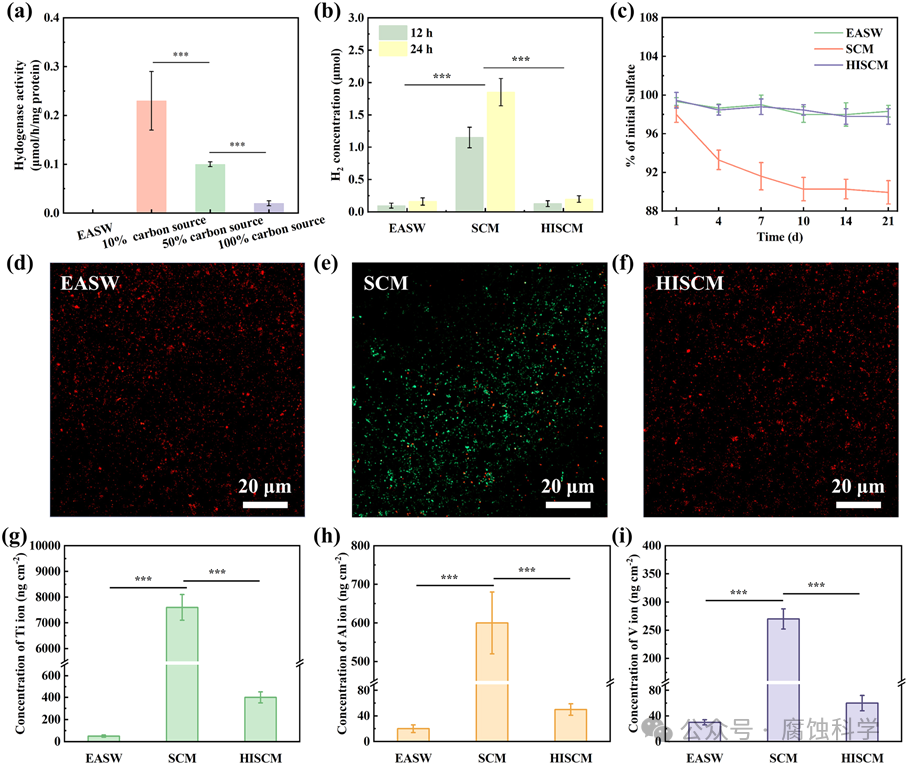
图6 胞外氢化酶活性、H₂生成及Ti-6Al-4V作为电子供体时的硫酸盐消耗、细胞活性与金属离子释放。
作者据此提出顺序耦合的MIC机制。
第一阶段,厌氧浸泡诱导TiO₂富集钝化膜形成氧空位相关缺陷,SRB产生的HS⁻/H₂S进一步进入并攻击缺陷富集区域,使膜层屏蔽性下降并暴露更多电化学活性位点。第二阶段,胞外氢化酶在受损表面催化2H⁺ + 2e⁻ → H₂,生成的H₂扩散至细胞并参与胞内硫酸盐还原和ATP合成,从而把合金氧化释放的电子与微生物能量代谢连接起来。这一机制强调,钝化膜破坏与氢化酶活性并不是彼此独立的两个现象,前者决定金属表面是否能够发生有效析氢,后者决定生成的还原当量能否以H₂形式被微生物利用。两者依次发生,才使钝化钛合金上的氢中介电子传递成为可能。
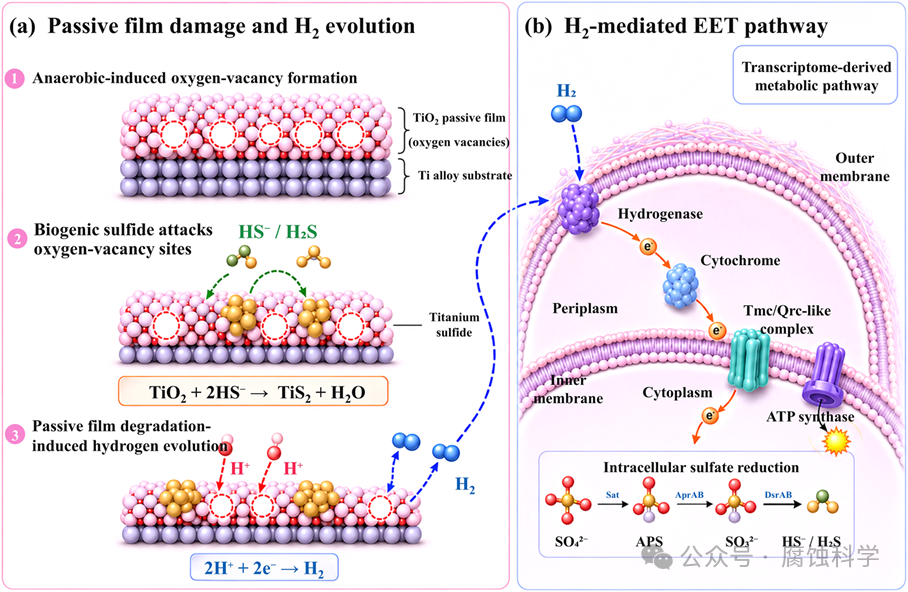
图7 D. bizertensis SY-1诱导Ti-6Al-4V微生物腐蚀的H₂中介电子传递机制。
▌ 文章亮点
一是明确了钝化膜失稳与电子获取之间的先后关系。研究没有将氢化酶活性直接等同于钛合金电子传递,而是首先证明氧空位累积、膜层变薄和硫化物侵入共同建立了可发生界面质子还原的表面条件。
二是揭示了生物膜减少而腐蚀加剧的贫营养效应。低碳条件下活细胞比例和生物膜厚度均下降,但蚀坑深度、蚀坑密度和腐蚀电流持续增加,说明MIC强度不能仅用细胞数量或生物膜量衡量。
三是建立了跨尺度的机制证据链。钝化膜截面与缺陷化学、电化学响应、转录组、胞外酶活性、H₂定量以及热失活对照相互衔接,使胞外氢化酶催化H₂生成不仅停留在基因表达或热力学推断层面。
四是区分了H₂中介路径与直接电子摄取。外膜细胞色素定位预测和导电磁铁矿对照未支持直接导电路径,含活性胞外氢化酶的上清则显著促进H₂生成、硫酸盐还原和金属离子释放,从而缩小了可能的电子传递机制范围。
▌ 小结
这项研究将Ti-6Al-4V的钝化膜演化与SRB能量代谢联系起来,提出了适用于钝化膜受损条件的H₂中介电子传递模型,氧空位和生物硫化物首先削弱TiO₂富集膜层,胞外氢化酶随后在缺陷表面促进质子还原,H₂再承担合金与细胞之间的主要电子载体。该结果将以往主要针对活性金属讨论的氢中介MIC路径拓展到钝化钛合金,并解释了贫营养条件下较少细胞仍可能造成更严重局部腐蚀的原因。
▌ 原文链接
https://doi.org/10.1016/j.corsci.2026.114196
免责声明:本网站所转载的文字、图片与视频资料版权归原创作者所有,如果涉及侵权,请第一时间联系本网删除。
官方微信
《腐蚀与防护网电子期刊》征订启事
- 投稿联系:编辑部
- 电话:010-62316606
- 邮箱:fsfhzy666@163.com
- 腐蚀与防护网官方QQ群:140808415

“海洋金属”——钛合金在舰船的

腐蚀与“海上丝绸之路”